
Антиген-специфический иммунный ответ на грибы A. fumigatus
При нормальном функционировании врожденной системы иммунитета участия специфического иммунитета для защиты против грибов A. fumigatus, по-видимому, не требуется. Это связано, в первую очередь, с тем, что концентрация спор грибов в воздухе относительно низка. Единичные споры, попавшие в респираторный тракт, удаляются за счет мукоцилиарного клиренса и фагоцитоза резидентными макрофагами. Однако при снижении по разным причинам функции альвеолярных макрофагов и нейтрофилов, а также при массированной контаминации спорами грибов, активация специфического иммунитета может быть необходимой. В этом случае протективный иммунный ответ ассоциирован с активацией особого типа Т-клеток хелперного ряда — так называемых Т-хелперов 1-го типа (Тх1)
[Cenci E. et al., 1997; Centeno-Lima S. et al., 2002]. В наиболее яркой форме Txl-ответ наблюдается у людей, имеющих профессиональный контакт со спорами грибов, в том числе с грибами Af, например у фермеров, работающих с зараженным сеном. У части фермеров развивается экзогенный аллергический альвеолит (болезнь фермеров), выражающийся в лихорадке, похожей на гриппозную. И наоборот, развитие как инвазивных процессов, так и гиперчувствительности к грибам A. fumigatus связано с недостаточной активацией Txl и доминированием других типов клеточного ответа.
Механизмы активации
адаптивного иммунного ответа
Иммунная система состоит из врожденного и адаптивного звеньев иммунитета, выполняющих разные, но связанные задачи. Адаптивный иммунитет, в свою очередь, делится на клеточный и гуморальный. Т-клетки, называемые Т-хелперами, играют ключевую роль в фокусировании иммунного ответа на определенные структуры (белки) патогенов. Дифференцировка Т-клеток определяется спектром продуцируемых ими цитокинов (цитокиновый профиль). В 80-х годах прошлого столетия была установлена дихотомия клеточного ответа, подразумевающая существование двух основных типов хелперного ответа, называемых Txl и Тх2. В настоящий момент накоплены данные, позволяющие детализировать картину и охарактеризовать новые популяции хелперов, отличающиеся от известных ранее.
Т-хелперы 1 (Txl)
Характерным цитокином для Txl является интерферону (IFN-y), а также фактор некроза опухолей а (TNF-а) и TNF-p. Основной функцией Txl является поддержка клеточно-опосредованного ответа, обладающего прямой литической активностью. Основной мишенью литических клеток являются внутриклеточные патогены, например вирусы. Неконтролируемый Txl-ответ вызывает повреждение тканей и ряд аутоиммунных заболеваний (диабет, ревматоидный артрит, псориаз). Для дифференцировки Т-клеток в Txl принципиальным является продукция антиген-представляющими клетками (АПК) при начальной встрече с патогеном IL-12 [Hsieh С. et al., 1993; Seder R. et al., 1993]. Ключевым транскрипционным фактором для диф ференцировки Т-клеток в Тх1 является молекула, называемая T-bet (также известная как ТЬх21), принадлежащая к Т-box семейству транскрипционных факторов [Szabo S. et al., 2000].
Т-хелперы 2 (Тх2)
Тх2 продуцируют IL-4, IL-5, IL-9, IL-10 и IL-13. Функцией Тх2 является поддержка гуморального ответа. Мишенью гуморального ответа являются внеклеточные патогены и растворимые токсины. Повышенный Тх2-ответ вызывает воспалительные заболевания легких, такие как астма и аллергия. При инициации ответа на патогены (аллергены) отсутствие продукции IL-12 приводит к формированию Тх2-ответа. Прямая ассоциация показана в этом случае с IL-4 [Swain S. et al., 1990; Le Gros G. et al., 1990]. Транскрипционным фактором, определяющим дифференцировку Т-клеток в Тх2, является фактор GATA-3, относящийся к семейству транскрипционных факторов GATA [Zhu J. et al., 2004].
Т-хелперы 17 (Тх17)
Тх17 являются недавно охарактеризованным типом хелперов, продуцирующим ИЛ-17А и -F. Показано их участие в аутоиммунных заболеваниях и аллергических реакциях. Для дифференцировки в Тх17 требуется продукция АПК трансформирующего фактора р (TGF-p) и IL-6 [Mangan Р. et al., 2006]. ROR — рецептор ретиновой кислоты является основным транскрипционным фактором, определяющим формирование Тх17 [Ivanov I. et al., 2006].
Т-хелперы 9 (Тх9)
Тх9 являются подтипом Тх17 и характеризуются повышенной продукцией IL-9. Дифференцировка в Тх9 осуществляется при наличии TGF-p, IL-2 и IL-4 при начале иммунного ответа [Schmitt Е. et al., 1994]. По функции Тх9 похожи на Тх17 и принимают участие в аутоиммунных и аллергических реакциях. Основным транскрипционным фактором является PU.l [Dardal-hon V. et al., 2008].
Фолликулярные Т-хелперы (Тф)
Тф экспрессируют высокий уровень хемокина CXCR5, цитокинов IL-10 и 1L-21, которые не продуцируются другими типами Т-хелперов. Для дифференцировки в Тф принципиальным является наличие IL-21 при начале иммунного ответа [Nurieva R. et al., 2008]. Транскрипционным фактором дифференцировки в Тф является Bcl-6 [Nurieva R. et al., 2009].
Т-регуляторы (Treg)
Treg формируются в тимусе в присутствии TGF-J3. Функцией Treg, в отличие от других СВ4+-клеток, является подавление иммунного ответа и поддержание гомеостаза [Shevach Е., 2009]. Подавление функции Treg приводит к формированию множественных аутоиммунных процессов. Транскрипционным фактором Treg является Foxp3 [Zheng Y., Rudensky A., 2007].
Первичное распознавание антигена АПК происходит за счет связывания системы TLRs с лигандами (PRRs) на поверхности патогенов. Количество и тип распознаваемых PRRs определяет спектр монокинов и цитокинов, продуцируемых АПК. Спектр цитокинов, продуцируемых АПК при начале иммунного ответа, определяет, в свою очередь, тип формирующегося клеточного ответа.
Общий механизм запуска адаптивного иммунного ответа
Формирование клеток,
представляющих антигены Af лимфоцитам
Общий механизм ответа адаптивной иммунной системы при массированном попадании спор гриба в легкие можно описать следующим образом. При попадании спор Af в альвеолы они опсонизируются молекулами фиколина-2 и другими растворимыми факторами и преимущественно удаляются за счет мукоцилиарного клиренса реснитчатым эпителием. Часть спор захватывается RAMs через систему связывания дектин-1 —1,3-р-б-глюкан и TLR4— 1,3-р-б-глюкан. Внутриклеточный киллинг спор осуществляется за счет продукции активных форм кислорода. Одновременно процесс переваривания спор сопровождается продукцией монокинов, цитокинов и хемокинов, что стимулирует хоминг нейтрофилов и моноцитов периферической крови к месту реакции [Taramelli D. et al., 1996; Borger Р. et al., 1999; Kauffman H. et al., 2000]. Часть пришедших моноцитов дифференцируется в дендритные клетки, способные вернуться в ближайший лимфатический узел и инициировать иммунный ответ. Такие дендритные клетки получили название антиген-представляю-щих клеток (АПК).
Первичная фаза активации адаптивного
иммунного ответа: формирование герминального центра
Моноциты, вернувшиеся из легких в ближайший дренирующий лимфатический узел, собираются в структуру, называемую герминальным центром. Такой герминальный центр будет существовать долгие годы и обеспечит формирование клеток памяти. АПК в герминальных центрах содержат споры гриба Af в двух компартментах: часть спор находится в фагосомах, часть — на поверхности клеток. Эта особенность АПК важна для активации адаптивного протективного иммунного ответа. При фагоцитозе спор гриба АПК активируются через систему 1,3-р-б-глюкан — дектин1/ТЫ<4 — MyD88 — NF-кВ. Количество вовлеченных в сигнал рецепторов и уровень сигнала с каждого рецептора определяет спектр цитокинов и монокинов, которые АПК начинает продуцировать непосредственно в лимфатическом узле. Количество активированных АПК в герминальном центре определяет размер этого центра. Каждая АПК обрабатывает белковые компонентны спор Af и часть из них выносит на свою поверхность в составе собственных молекул главного комплекса гистосовместимости II класса (ГКГП) (рис. 6).
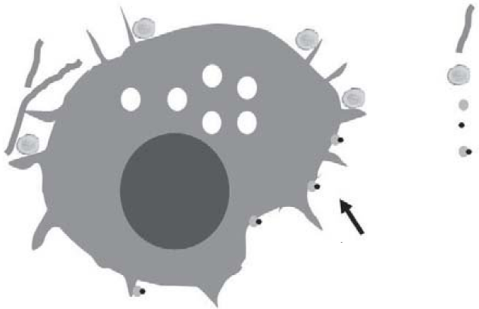
Мицелий Af Споры Af Молекула ГКГН Пептиды Af Комплекс ГКГСН — пептиды Af
Фолликулярная дендритная клетка
Рис. 6. Первичная фаза активации адаптивного иммунного ответа: формирование герминального центра.
Дендритные клетки, нагруженные антигенами Af, возвращаются из легких в ближайший лимфатический узел, где начинается процесс формирования герминального центра — фолликула. Фолликулярная дендритная клетка перерабатывает белковые антигены спор и гифов, попавших в эндосомы. Процесс переработки заканчивается формированием комплексов молекул ГКГН с различными пептидами различных белков Af. Такие комплексы транспортируются на поверхность клетки, где они будут распознаваться T-клетками. Фрагменты нативных спор и мицелия будут распознаваться В-клетками
Вторичная фаза активации клеток СО4+-фенотипа (Т-хелперов): выбор типа хелперного ответа
На поверхности каждой В-клетки имеются молекулы, называемые В-клеточными рецепторами и являющиеся трансмембранными формами иммуноглобулинов. Эти молекулы могут связываться с различными мишенями, однако каждая из клеток несет рецептор только одной специфичности.
На поверхности каждой Т-клетки имеются молекулы, называемые Т-клеточными рецепторами, которые могут связываться с собственными молекулами ГКГП. Каждая Т-клетка, так же как и В-клетка, может связываться только с одной молекулой ГКГП, несущей фрагмент какого-либо белка, своего или чужого. Филогенетической особенностью Т-клеточного рецептора является то, что он не связывается с «пустой» молекулой ГКГП, но может связываться с разными комплексами конкретной молекулы ГКГП с разными пептидами (рис. 7).
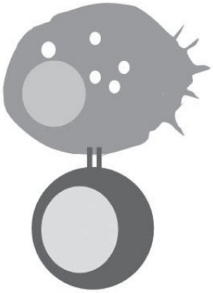
Распознавание антигена, представленного АПК
Активация Т-клетки после взаимодействия с АПК
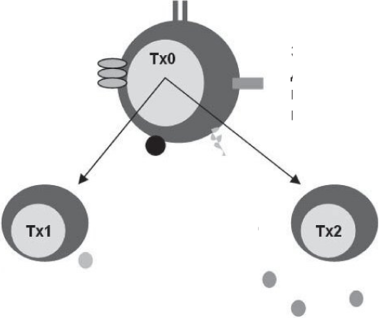
Пролиферация и дифференцировка в Тх1 и Тх2, синтезирующие разные цитокины
IL-4, -5, -10, -13
IFN-y
Рис. 7. Дихотомия клеточного ответа
Экспрессия рецепторов для цитокинов, хемокинов, проапоптотических рецепторов и молекул адгезии
В периферической крови циркулируют биллионы Т- и В-кле-ток различной специфичности, которые постоянно дренируют с большой скоростью все лимфатические узлы и другие кроветворные ткани. При попадании в лимфатический узел, в котором сформирован герминальный центр, содержащий антигены гриба Af, В-клетки, специфичные к разным структурам спор (не только белковым), экспонированных на поверхности АПК, будут тормозиться и постепенно фиксироваться за счет формирования комплекса со спорами. Одновременно происходит торможение и фиксация Т-клеток на комплексе ГКГП — пептиды, которые формируют сами АПК после внутриклеточного процессинга белков, входящих в состав спор. В результате в лимфатическом узле формируется зрелый герминальный центр, основой которого являются фолликулярные дендритные клетки, вокруг которых имеется зона пролиферации Т-клеток и зона пролиферации и дифференцировки В-клеток (рис. 8). Т- и В-клетки, прошедшие созревание
Слизистая оболочка
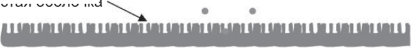
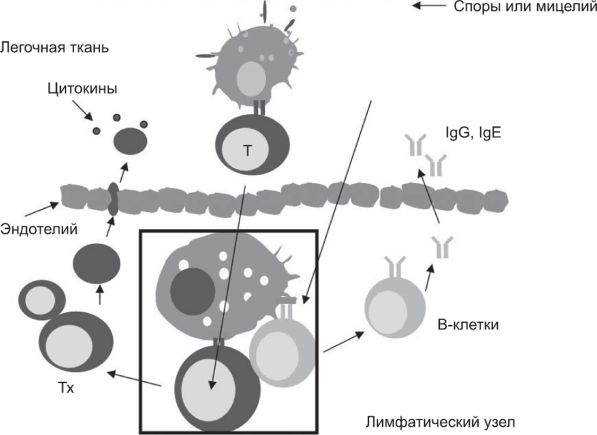
Рис. 8. Иммунный ответ на грибы Aspergillus fumigatus.
Путь созревания T- и В-клеток показан стрелками. Формирование в лимфатическом узле плотного контакта между АПК, T- и В-клетками выделено рамкой в эффекторы, возвращаются в кровоток. Далее Т-клетки через систему интегриновых взаимодействий с эндотелием сосудов придут в место воспаления — в легкие, а В-клетки уйдут в костный мозг, где будут продуцировать IgG-антитела против различных белков и углеводов Af.
В процессе формирования комплекса АПК — Т— В-клетки начинается дифференцировка как Т-, так и В-клеток. Дифференцировка Т-клеток в определенный вид Т-хелперов зависит от типа цитокинов и монокинов, продуцируемых АПК, что было описано ранее. Протективным при ответе на гриб Af является формирование Txl [Chai L. et al., 2010]. Формирование Тх2 и Тх17 связано с аллергическими реакциями [Murdock В. et al., 2011; 2012]. Тх 17 ассоциированы также с патологическими реакциями в легких при ответе на Л/[Zelante Т. et al., 2007; Zelante Т. et al., 2009]. Показано, что инактивация пути 1,3-р-б-глюкан — дектин1/ТЬК4 — IL-1R8 — MyD88 — NF-кВ приводит к активации Тх17 и снижению протекции [Bozza S. et al., 2008].
Эффекторная фаза адаптивного ответа на Af
Txl обладают собственной литической активностью, направленной на эпителиальные клетки, инфицированные спорами Af. Дифференцированные Txl способны выходить из кровеносного русла в ткани, что обеспечивается специальным механизмом ин-тегриновой адгезии к стенкам сосудов. В норме эндотелий сосудов не экспрессирует молекул адгезии. Однако при инфекции в том или ином органе резидентные макрофаги, фагоцитирующие патогены, секретируют вазоактивные молекулы, стимулирующие локальную экспрессию молекул адгезии на клетках эндотелия, называемых молекулами межклеточной адгезии ICAM-1. ICAM-1 являются «крючками», необходимыми для торможения нейтрофилов и лимфоцитов (процесс, называемый «tethering»), в норме на большой скорости циркулирующих в крови [Christopher С. et al., 2009]. Наивные, не дифференцированные Т- и В-клетки не экспрессируют молекулы адгезии на своей поверхности, что позволяет им циркулировать мимо активированного эндотелия. При активации через Т-клеточный рецептор лимфоциты начинают экспрессировать интегрины [Burbach В. et al., 2007], являющиеся лигандами ICAM-1. Интегрины опосредуют взаимодействие между клетками и внеклеточным матриксом, а также между клетками при прохождении клеток в ткани (tran-sendothelial migration, ТЕМ) [Pribila J. et al., 2004]. Интегрины представляют собой трансмембранный гетеродимер, состоящий из а- и p-цепей, связанный с актиновыми филаментами цитоскелета клетки. В результате ТЕМ Тх1 приходят в легкие, где лизируют зараженные эпителиальные клетки. Мертвые клетки удаляются фагоцитами.
В-клетки также являются активными участниками ответа на грибы Af. В-клетки обладают способностью представлять антигены Т-клеткам, хотя и уступают в этом макрофагам и дендритным клеткам. На поверхности В-клеток экспрессируется определенный набор TLRs, принимающих участие в распознавании патогенов. Кроме того, В-клетки несут на своей поверхности иммуноглобулиновые рецепторы, способные распознавать различные структуры. В-клетки захватывают споры гриба через иммуноглобулиновый рецептор и интернализуют их, а также распознают гифы грибов через TLRs. Формирование плотного контакта в герминальном центре между АПК, Т- и В-клетками приводит к активации не только Т-, но и В-клеток. В-клетки приобретают способность продуцировать антитела разных классов (IgG, А, Е) с повышенным сродством (аффинностью) к белкам и углеводным молекулам Af. Роль иммуноглобулинов IgG, IgA и IgE значительно различается. В зависимости от степени сродства к антигену и титра антител их роль может быть как про-тективна, так и патогенна. В целом IgG-антитела являются про-тективными. Они попадают в легкие в процессе миграции PMN и лимфоцитов в ткань вместе с внеклеточной жидкостью. В легких IgG-антитела связываются со спорами и мицелием грибов, а комплексы IgG — споры захватываются нейтрофилами за счет связывания с FcyR.
Глава 2
Авторы: Митрофанов В.С., Свирщевская Е.В.
