
БУРЫЙ МЕДВЕДЬ (URSUS ARCTOS L.) ПОБЕРЕЖЬЯ БЕЛОГО МОРЯ КОЛЬСКОГО ПОЛУОСТРОВА
В статье приводится анализ материалов нескольких экспедиций в Терский район Мурманской области. Целью исследования было сравнительное изучение населения бурого медведя на побережье Белого моря, в долинах крупных рек и во внутренних территориях района. Работы включали оценку численности медведя, выявление особенностей распределения и сезонного освоения пространства, экологической структуры популяции, отработку методов сбора и консервации биологического материала для молекулярно-генетических исследований. Полученные данные свидетельствуют о высокой плотности населения вида, общая численность медведя в районе в 2-3 раза превышает официальную оценку - 92 особи на 2014 г. и достигает 250 особей. Анализ возрастной структуры на основе данных учетов показал преобладание молодых животных в исследуемой популяции. Наблюдения и анализ собранных проб выявили характер и сезонные особенности питания бурого медведя на побережье. Впервые были апробированы неинвазивные методы сбора биоматериала при проведении учета и получены результаты молекулярно-генетических исследований данной популяции, которые указывают на высокий уровень генетического разнообразия населения бурого медведя исследуемого региона. Среднее число аллелей составило 6,5 на локус, а значения наблюдаемой гетерозиготности находились в пределах от 0,71 до 0,86.
В ходе подготовительных работ, обсуждая пространственно-генетические отношения популяций, мы исходили из их деления на географические, экологические и элементарные (Наумов, 1963). При этом учитывалось мнение некоторых авторов об особенностях экологии медведя на побережье Белого моря (Хохлов, Макарова, 2011). Работы, выполненные в Северной Америке, тундровой зоне Чукотки и на Дальнем Востоке России, показали, что вдоль морских побережий и на нерестовых реках формируются особые условия существования для медведя, определяющие экологическую и этологическую структуры его населения (Ревенко, 1993; Чернявский, Кречмар, 2001; Сироткин, Панковский, 2006; Ben-David et al., 2004 и др.). Исходя из этого, мы предположили, что на морском побережье и реках Кольского полуострова, впадающих в Белое море, существует особая экологическая популяция бурого медведя. Ее специфика, по-видимому, стала формироваться по мере проявления эффекта акклиматизации горбуши (Oncorhynchus gorbuscha). Акклиматизация горбуши в бассейне Белого моря вызвала серьезное изменение экосистемы самого моря и впадающих в него рек, в которых происходит нерест этой рыбы. Эффект интродукции сказался на многих видах наземных позвоночных, однако влияние его на бурого медведя не изучалось. Кроме этого, побережье Белого моря привлекательно для медведя и по ряду других причин: существование прибрежных «лугов», выброс на берег снулой рыбы, трупов млекопитающих и др. В связи с этим, для определения численности, полового и возрастного состава населения вида, выявления возможных миграций и степени панмиксии нами были начаты учеты популяционных группировок медведя в приморских и внутренних территориях, сбор биологического материала для молекулярногенетических исследований, наблюдения за поведением зверей на открытых пространствах.
МАТЕРИАЛ И МЕТОДЫ
Полевые работы проводились на территории
Терского района Мурманской области весной, летом и осенью 2012-15 гг. Ландшафт района исследований однороден и представлен слабохолмистой равниной. Все реки относятся к бассейну Белого моря. Крупнейшие озера: Вялозеро (площадь 98,6 км2), Сергозеро (88,8 км2) и Канозеро (84,3 км2). Климат субарктический с влиянием Белого моря. Большая часть района расположена в подзоне северной тайги, на востоке она переходит в лесотундру. Фитоценозы приморской тундры тянутся узкой полосой вдоль берега моря. В напочвенном покрове таежного и тундрового ландшафтов основу составляют вороника, брусника, черника, багульник, толокнянка, карликовая березка, несколько видов плаунов, луговик и другие растения. Для возвышенных участков характерно березовое криволесье с деревьями высотой от полутора метров (на севере) до 6-8 м (на юге) лесотундры, иногда с подлеском из можжевельника и карликовой березы. Понижения рельефа заняты болотами разных типов (Семенов-Тян-Шанский, 1982). У самого моря произрастают растения песчаного пляжа и водоросли литорали.
Методические приемы, использованные в проекте, разделяются на две группы: полевые и лабораторные.
Первые включают в себя методы, направленные на: 1 - оценку численности вида (учет по следам и встречам животных на маршрутах; установка фотоловушек на тропах, у привады; визуальные наблюдения; сбор проб экскрементов с последующей идентификацией особей по микросател-литным маркерам); 2 - изучение особенностей экологии вида (сбор и анализ состава экскрементов; регистрация таких следов активности животных, как разрушение муравейников, раскопка гнезд насекомых и мышей, поедание травянистой растительности, падали; маркировочное поведение); 3 - сбор опросных сведений и проб для генетического анализа.
Учет численности проводили путем измерения отпечатков пальмарной мозоли (Klein, 1959) на линейных, радиальных и в единичных случаях на кольцевых (замкнутых) маршрутах в соответствии с общепринятыми методиками (Данилов и др., 1979, 1985, 2014; Пажетнов, Кораблев, 1979; Методические указания..., 1990). Общая протяженность пеших учетных маршрутов составила 453 км. Маршруты пролегали вдоль морского побережья, по долинам рек, грунтовым дорогам и тропам животных, то есть там, где имелась возможность зафиксировать следы зверей. Треки маршрутов записывали различными GPS- навигаторами серий Garmin Montana и еТгех. На маршрутах фиксировали визуальные встречи зверей и их индивидуальные особенности, все проявления жизнедеятельности животных.
Для изучения питания медведя, фауны эндопаразитов и молекулярно-генетических исследований было собрано 296 проб экскрементов. Все пробы на месте обнаружения фотографировали GPS-навигатором Garmin Montana 650 или планшетным компьютером Sony Xperia Z2. Это позволило создать геометки с координатами для каждой пробы и автоматизировать дальнейшие процедуры работы с полученным материалом в лаборатории. Изучая влияние медведя на сообщества муравьев, проводили учет муравейников (и=527), которые были разделены на три класса в зависимости от размера и на две группы - разрушенные и нетронутые медведем.
Для регистрации суточной активности, а также в дополнение к стандартным методам учета использовали 6 автоматических камер ScoutGuard 880МК-8М.
При сборе проб для генетического анализа мы использовали три различных метода фиксации материала: консервация с помощью стабилизирующего набора Qiagen QIAamp DNA stool kit (Qiagen Inc.), в оригинальном спирто-солевом растворе и в гранулированном силикагеле (КСКГ ГОСТ 3956-76). Также производили отбор проб для паразитологических исследований. Пробы сопровождали описанием, содержащим визуальную оценку «свежести», состояния и экспозиции в отношении попадания прямых солнечных лучей, что имеет значение для сохранности ДНК.
Вторая группа методов обобщала все процедуры лабораторного анализа собранного материала. Выделение ДНК из образцов производили в соответствии со стандартным протоколом (Linacre et al., 2011). Изучение генетического статуса популяции на обследуемой территории проводили методом микросателлитного анализа с предварительной ПЦР (полимеразная цепная реакция) продуктов и с использованием 8 микросателлитных маркеров (MU09, MU10, MU23, MU59, MU05, G10L, MU51, MU50) (Taberlet et al., 1997) и маркером для определения пола SE47 (Yamamoto, et al., 2002).
В работе использованы пакеты навигационных и картографических программ (Sas Planet, OziExplorer, Google Earth, Mapinfo Professional), статистических (Statgraphics Plus и Microsoft Office Excel) и специализированных (Bioedit, MEGA 4, Arlequin 3.11, PopGen, GenAlex).
РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЯ
Согласно разным оценкам, численность бурого медведя Мурманской области возросла с 200-400 (1970-80 гг.) (Семенов-Тян-Шанский, 1982) до 784 голов (2014 г.). Необходимо заметить, что с 1997 по 2007 гг. численность вида в области оценивалась в 450-500 особей (Губарь, 2000, 2004, 2007; Хохлов, Макарова, 2006). С 2008 г. численность хищника, по официальным данным, необыкновенно возросла (2008 г. - 600, 2009 г. - 700 особей) (Губарь, 2010) Вызывает сомнение достоверность такой оценки в отношении бурого медведя - типичного представителя ^-стратегии размножения. За минувшие годы не происходило и внезапных изменений ландшафтно-климатических условий и в целом среды обитания вида, которые могли бы повлечь за собой резкий рост его численности за счет размножения и/или миграции из соседних областей. Напротив, для приграничных областей Северо-Запада России было характерным направление дисперсии молодых зверей на запад. Наиболее отчетливо эти процессы происходили во второй половине - конце XX века (Pulliainen, 1990, 1997; Kopatz et al., 2014). Вероятно, причины, побудившие государственные организации, ответственные за мониторинг, управление, эксплуатацию и сохранение охотничьих животных, «увеличить» размер популяции - иные. Возможно, не последнюю роль в этом сыграли и участившиеся в последние годы случаи появления хищников в населенных пунктах и нападения медведей на людей (3 случая в 2015 г.). В такой ситуации попытки объяснить происходящее ростом населения животных приобретают статус официального заключения. Причины появления медведей рядом с человеком известны и изучены многими исследователями (Пажетнов, 2011; Herrero, 1985; Kojola, Heikkinen, 2012).
Всего за период исследований были зарегистрированы 70 медведей с шириной пальмарной мозоли от 6 до 15 см. Общее количество встреченных следов было намного больше, но, опираясь на существующие рекомендации к проведению учетов (см. материалы и методы) и наш опыт, считаем, что зарегистрированные 70 отпечатков принадлежали разным животным. В частности, при прохождении одного из маршрутов (почти прямолинейный, протяженностью 12 км) мы наблюдали не менее 8 разных медведей, среди которых были: самка с двумя сеголетками, самка с двумя пестунами и 4 взрослых одиночных медведя, при этом зафиксировано было всего 3 следа (9, 11 и 13 см). На отдельных участках побережья протяженностью всего около 2 км за 2 часа наблюдений мы визуально отмечали до 5 различных зверей. В целом, исследуемая территория побережья, на которой выполнены учеты, составила около 200 км. Учет был выполнен и в некоторых удаленных -материковых, частях района (рис. 1). Плотность населения медведя в прибрежной зоне варьировала и местами достигала 7 экз. на 1000 га, но в среднем составила 1,8-2 экз. на 1000 га. На основании данных, полученных в результате применения общепринятого подхода к экстраполяции результатов учета (Методические указания..., 1990) на больших территориях, численность бурого медведя Терского района может быть оценена в 250 особей.
Исходя из опыта учетных работ даже в местах с хорошими условиями для регистрации следов (подходящие субстраты: песчаные, влажные суглинистые и т.п.), нет гарантии встречи всех следов животных, обитающих на данной территории. На открытых местах важна визуальная регистрация зверей, и в этом случае решающее значение приобретает время проведения учета. Как показали наши наблюдения, в утренние и дневные часы встреч животных не было. Все встречи медведей на маршрутах происходили в вечернее время (п=12). Данные, полученные с помощью автоматических камер (и=11, число зафиксированных встреч животных), указывают, что все медведи, вне зависимости от погодных условий, попадали в кадр после 19:00, а пик суточной активности приходился на период с 19:00 до 22:00 часов, что совпадает с визуальными наблюдениями. Таким образом, для получения наиболее достоверной информации учет желательно проводить в период наибольшей активности животных.
Нами отмечены сезонные особенности пребывания медведей в прибрежных районах. Весной, после выхода из берлоги, медведи подкочевывают на побережье и начинают кормиться на литорали и в прибрежной зоне. Добычей медведя становятся ластоногие и морские выбросы. По мере таяния снега, медведи перемещаются в приморские тундры и тайгу в поисках прошлогодних ягод брусники, вороники, клюквы, которые хорошо сохраняются до июня. Летом растения, формирующие разнотравье приморских лугов и песчаных пляжей, приобретают важное значение в рационе медведя. В июле 2015 г. мы наблюдали скопления медведей именно в местах массового развития травянистой растительности, в то время как соседствующие тундровые участки почти полностью «освобождались от медвежьего присутствия».
Вместе с тем, годом ранее распределение медведей было другим, что было связано с более ранним созреванием черники, привлекавшей зверей в тайгу, и высоким уровнем моря, залившим большую часть прибрежных «пастбищ».
В 2012 г. очень хороший урожай ягод привлек в приморские тундры значительную часть популяции хищника, а неурожай 2014 года заставил медведей переместиться в тайгу, где кормовые условия были лучше, что заметно отражалось на результатах учетов. Так, если в 2012 г. плотность населения медведя в упомянутых биотопах достигала 2, то в 2014 г. - только 0,6 экз. на 1000 га. Таким образом, проведение мониторинговых работ -учетов на постоянных маршрутах, позволяет не только следить за численностью животных, но и выявлять конкретные причины и характер локальных концентраций.
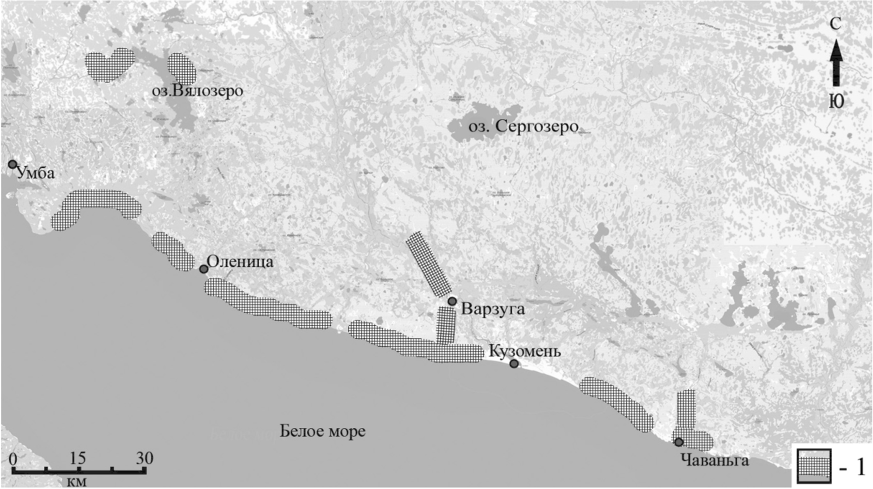
Рис. 1. Район исследований: 1 - районы проведения полевых работ.
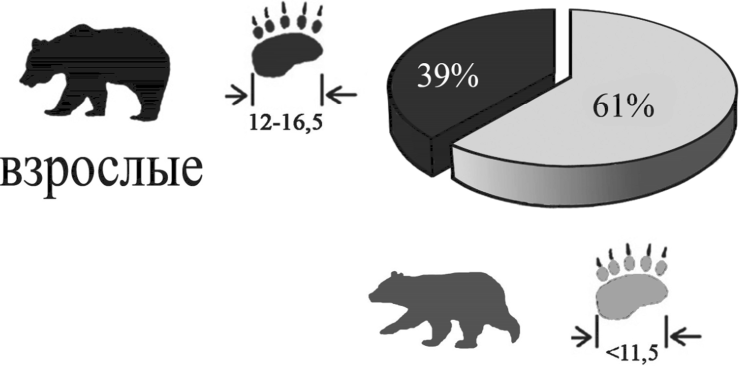
Анализ материалов учетов бурого медведя по следам позволяет определить и возрастную структуру популяции. Следуя общепринятому подходу к оценке возраста медведя по ширине отпечатка передней лапы на грунте (Данилов и др., 1979, 2014; Семенов-Тян-Шанский, 1982; Klein, 1959), мы проанализировали встреченные нами следы. Оказалось, что в изучаемой популяции преобладают молодые животные (61%), остальная часть представлена взрослыми (39%), а старые животные с шириной отпечатка более 16,5 см встречены не были (рис. 2).
Ранее мы упомянули о существующих недостатках традиционных методов учета. Теперь они могут быть компенсированы, а качество и объем получаемой информации существенно дополнены при использовании новых методических приемов. Современные молекулярно-генетические методы успешно применяются для оценки ресурсов и структуры популяции бурого медведя в мире (Taberlet et al., 1997 и др.). По результатам анализа биоматериала, собранного в 2014 г., составлены генетические профили 21 особи бурого медведя Терского района Мурманской области (табл. 1).
молодые
Рис. 2. Возрастная структура популяции бурого медведя в Терском районе Мурманской области (по данным измерений ширины следа передней лапы).
В результате, учет приобретает индивидуальный характер и позволяет идентифицировать не только пол зверя, родственные взаимоотношения и его положение в данной территориальной группировке, но и отмечать перемещения животных. Результаты исследований материала, собранного неинвазивными методами, качественно отличаются от данных, полученных из образцов, добытых на охоте животных, поскольку особь не изымается из популяции и сохраняется возможность оценки ее роли в популяции.
Выявление полового состава популяции бурого медведя - весьма трудоемкое занятие. Одним из подходов служит анализ охотничьей статистики. Именно такой подход использовали А.М. Хохлов и О.А. Макарова (2006), проанализировав данные добычи медведя в области с 1996 по 2005 гг., когда было добыто 232 особи (среди них 149 самцов). Авторы предположили, что возможно такое соотношение полов характеризует северные популяции. В нашем материале соотношение полов, напротив, несколько отличалось в пользу самок (табл. 1), хотя сама выборка пока слишком мала, чтобы рассматривать ее статистическую достоверность.
Обработка собранного материала продолжается и по завершению анализа данных станет предметом специального рассмотрения. Пока можно добавить, что все локусы были полиморфными, число аллелей в изученной выборке варьировало от 5 до 10 и в среднем составило 6,5 на локус. Наблюдаемая гетерозиготность (Но) для большинства локусов была высокой и находилась в пределах от 0,71 до 0,86.
При проведении полевых работ были обнаружены 4 маркировочных дерева (так называемые «медвежьи деревья»). Соотношение видов среди них было следующим: береза (В etui a sp.) - 2, ель (Picea sp.) - 2. Маркировочные деревья находились на медвежьих тропах и были удалены от моря не более чем на 300 м. По следам было видно, что медведи используют их на протяжении нескольких лет. Диаметр стволов этих деревьев не превышал 12 см, обе ели были заломлены на высоте 160 и 190 см, а на одной из берез имелись закусы на высоте 190 см. На всех деревьях имелись потертости и прилипшая шерсть, у елей некоторые ветви были обкушены.
1. Пол и генетические профили идентифицированных особей
|
Особь |
Локус |
Пол |
|||||||||||||||
|
MU09 1 |
MU09 2 |
MU10 1 |
MU10 2 |
MU23 1 |
MU23 2 |
MU59 1 |
MU59 2 |
Mu05 1 |
Ми05 2 |
G10L 1 |
G10L 2 |
MU51 1 |
MU51 2 |
MU50 1 |
MU50 2 |
||
|
МО20 |
098 |
098 |
141 |
153 |
172 |
172 |
228 |
246 |
121 |
123 |
182 |
182 |
140 |
148 |
ПО |
124 |
д' |
|
МО21 |
110 |
122 |
147 |
153 |
170 |
174 |
242 |
250 |
127 |
127 |
182 |
186 |
142 |
148 |
по |
128 |
д' |
|
МО22 |
098 |
120 |
147 |
147 |
172 |
172 |
248 |
250 |
115 |
125 |
182 |
184 |
148 |
148 |
124 |
126 |
д' |
|
МО23 |
098 |
120 |
145 |
147 |
171 |
172 |
232 |
246 |
117 |
125 |
184 |
188 |
148 |
148 |
110 |
130 |
|
|
МО24 |
098 |
098 |
141 |
153 |
172 |
172 |
226 |
250 |
117 |
127 |
182 |
182 |
148 |
148 |
ПО |
НО |
д' |
|
МО25 |
112 |
122 |
147 |
153 |
171 |
174 |
228 |
246 |
115 |
117 |
182 |
188 |
148 |
148 |
ПО |
124 |
д' |
|
МО26 |
098 |
122 |
145 |
147 |
171 |
172 |
246 |
246 |
117 |
121 |
186 |
188 |
144 |
148 |
ПО |
124 |
|
|
МО27 |
098 |
120 |
145 |
153 |
172 |
174 |
242 |
250 |
115 |
125 |
186 |
188 |
148 |
148 |
ПО |
134 |
|
|
МО28 |
120 |
120 |
147 |
153 |
164 |
170 |
250 |
250 |
123 |
123 |
182 |
188 |
150 |
150 |
ПО |
НО |
д' |
|
МО29 |
098 |
120 |
147 |
153 |
172 |
172 |
242 |
250 |
121 |
127 |
182 |
186 |
144 |
148 |
122 |
130 |
|
|
МОЗО |
120 |
120 |
147 |
147 |
164 |
172 |
244 |
250 |
125 |
127 |
186 |
186 |
144 |
148 |
124 |
128 |
|
|
МО31 |
122 |
122 |
145 |
147 |
164 |
172 |
246 |
000 |
115 |
121 |
182 |
188 |
148 |
150 |
124 |
124 |
|
|
МО32 |
120 |
122 |
147 |
147 |
164 |
172 |
242 |
250 |
125 |
127 |
182 |
182 |
144 |
150 |
122 |
124 |
|
|
МОЗЗ |
120 |
120 |
145 |
147 |
172 |
172 |
232 |
242 |
121 |
127 |
182 |
184 |
144 |
148 |
124 |
130 |
д' |
|
МО34 |
112 |
122 |
133 |
143 |
172 |
174 |
242 |
246 |
115 |
127 |
182 |
190 |
140 |
148 |
122 |
124 |
д' |
|
МОЗ 5 |
120 |
122 |
147 |
147 |
172 |
172 |
228 |
244 |
125 |
125 |
182 |
182 |
144 |
148 |
ПО |
128 |
д' |
|
МОЗ 6 |
098 |
122 |
145 |
147 |
164 |
172 |
242 |
250 |
117 |
125 |
182 |
184 |
148 |
150 |
122 |
130 |
|
|
МОЗ 7 |
118 |
120 |
145 |
147 |
164 |
172 |
250 |
250 |
117 |
127 |
182 |
186 |
144 |
146 |
124 |
124 |
|
|
МО38 |
120 |
122 |
133 |
145 |
170 |
172 |
228 |
246 |
115 |
127 |
182 |
188 |
140 |
144 |
128 |
128 |
|
|
МО39 |
098 |
120 |
147 |
147 |
172 |
174 |
232 |
232 |
115 |
117 |
186 |
188 |
148 |
150 |
124 |
130 |
|
|
МО40 |
098 |
126 |
145 |
147 |
172 |
174 |
232 |
242 |
115 |
123 |
182 |
188 |
148 |
150 |
ПО |
124 |
_2_ |
ТИРРОНЕН, ПАНЧЕНКО, КУЗНЕЦОВА
Состав кормов бурого медведя изучаемого региона разнообразен и так же, как и в других частях его ареала, характеризуется постепенной сменой компонентов в течение года. В самом начале весны медведи активно используют ресурсы литорали. Основным источником пиши в ранневесенний период служат прошлогодние ягоды брусники и вороники, существенным дополнением становится добыча нерпы (рис. 3). В июне происходит переход от поедания ягод к питанию травянистой растительностью (рис. 4). Летом растения, формирующие разнотравье приморских лугов и песчаных пляжей, приобретают важнейшее значение в рационе медведя (рис. 5). В августе-сентябре созревающие ягоды черники, брусники, вороники, толокнянки, клюквы составляют основные нажи-ровочные корма медведей и вновь привлекают зверей в приморские тундры (рис. 6). На протяжении всего активного периода жизни медведя насекомые, прежде всего общественные перепончатокрылые, играют важную роль в рационе медведя. Наиболее активно медведи разрушают гнезда муравьев в конце лета и осенью. Определено поедание медведем муравьев родов Formica, Myrmica, Lasius и Companotus. Разрушение муравейников в летне-осенний период составляет - 94,2% от общего числа учтенных (/7=138), а в весенний -72,4% (/7=376) (табл. 2).
В данном случае мы учитывали только насыпные муравейники, однако большое количество жилищ муравьев, обустроенных в земле, под камнями, в колодах и гниющих стволах деревьев, разрушаемых медведями, в учет не попали, поскольку обнаружить и учесть не разрушенные гнезда муравьев в таких укрытиях весьма сложно. Эта работа заслуживает специального исследования квалифицированными энтомологами. О значении муравьев в питании медведя мы также судили по встречаемости остатков всех четырех упомянутых родов муравьев в экскрементах (рис. 3-6). Примечательно, что данный тип кормодобывающей деятельности имеет также индивидуальный характер. Так, на участке леса, примыкающего к побережью, площадью около 2-3 км2 были обнаружены сотни перевернутых плоских камней, под которыми обустраивают гнезда муравьи рода Lasius. Вес камней от 1-3 до 20 кг, по форме они напоминали плиты. Каждый камень переворачивался медведем по несколько раз в течение года. Интересно, что данный участок леса не является уникальным в том числе и по наличию каменных плит, но только здесь медведи (а вероятно, один медведь) осуществляют «сплошной учет» поселений муравьев.
2. Разорение насыпных муравейников медведем в Терском районе Мурманской области
|
Состояние |
Большой |
Средний |
Малый |
|||
|
/7 |
% |
/7 |
% |
п |
% |
|
|
Весна |
||||||
|
Не разрушен |
25 |
56,8 |
96 |
67,9 |
170 |
83,7 |
|
Разрушен и восстановлен |
16 |
36,4 |
39 |
27,5 |
30 |
14,8 |
|
Погиб |
3 |
6,8 |
7 |
4,9 |
3 |
1,5 |
|
Осень |
||||||
|
Не разрушен |
14 |
100,0 |
35 |
89,7 |
79 |
92,9 |
|
Разрушен и восстановлен |
0 |
0,0 |
4 |
10,3 |
6 |
7,1 |
|
Погиб |
0 |
0,0 |
0 |
0,0 |
0 |
0 |
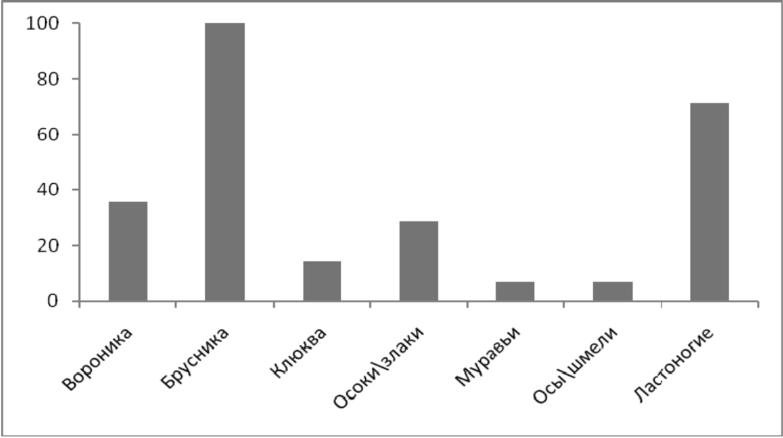
Рис. 3. Встречаемость кормов в питании бурого медведя Терского района в мае: по оси абсцисс - вид корма; по оси ординат - встречаемость (%) данного компонента в пробах (и=14).
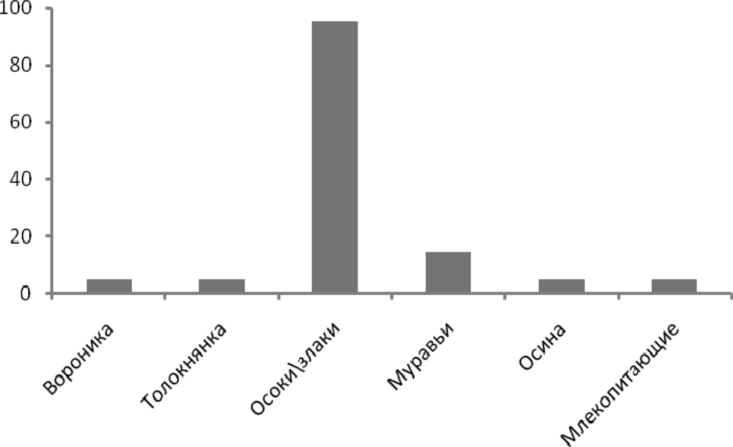
Рис. 4. Встречаемость кормов в питании бурого медведя Терского района в июне: по оси абсцисс - вид корма; по оси ординат - встречаемость (%) данного компонента в пробах (и=21).
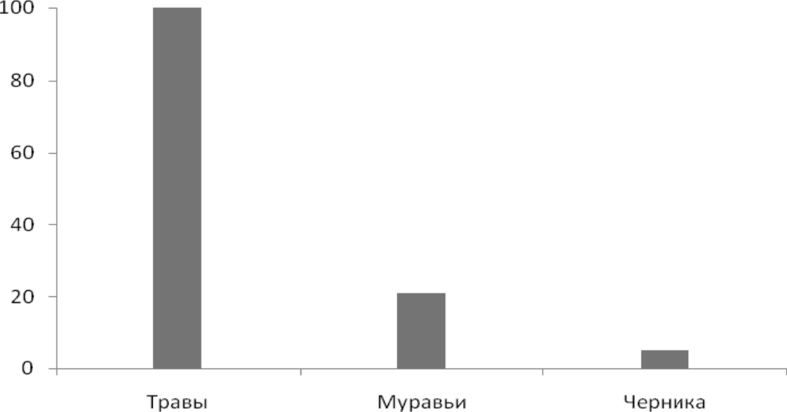
Рис. 5. Встречаемость кормов в питании бурого медведя Терского района в июле: по оси абсцисс - вид корма; по оси ординат - встречаемость (%) данного компонента в пробах (л= 129).
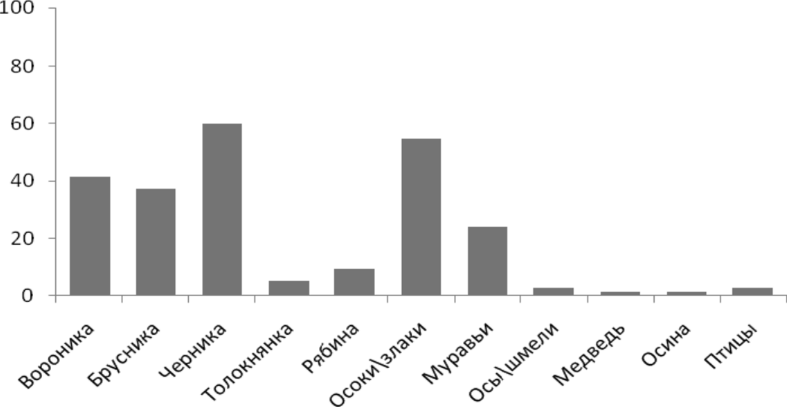
Рис. 6. Встречаемость кормов в питании бурого медведя Терского района в августе-сентябре: по оси абсцисс - вид корма; по оси ординат - встречаемость (%) данного компонента в пробах («=75).
Одной из целей нашего исследования было проведение наблюдений за медведем на нерестовых реках лососевых рыб за пределами Дальневосточного региона. Перед началом полевых работ мы собрали немало свидетельств о медведях, ловящих рыбу на реках Кольского полуострова. Однако за весь период проведения полевых работ нам ни разу не удалось наблюдать этот вид кормодобывающей деятельности медведя. Более того, только в 1 из 296 собранных экскрементов были найдены кости и рыбья чешуя, но эта проба была найдена на охотничьей приваде, состоявшей из рыбных отходов. Тем не менее, мы не исключаем случаев ловли рыбы отдельными медведями, являющейся индивидуальной чертой поведения особи или семейной группы, а также возможности сбора медведями снулой после нереста горбуши, плотность которой на нерестилищах в некоторых реках составляет 12-15 особей на 100 м2 (Зубчен-ко и др., 2004).
БЛАГОДАРНОСТИ
Авторы статьи выражают искреннюю признательность охотоведу Терского района И.И. Чернявскому за всестороннюю помощь при проведении полевых работ и сборе биологического материала.
Работа выполнена при поддержке гранта РФФИ № 14-04-31796. Отдельные этапы работ поддержаны из средств федерального бюджета на выполнение государственного задания № 0221-2014-0006.
ЛИТЕРАТУРА
Губарь Ю.П. Бурый медведь // Состояние ресурсов охотничьих животных в Российской Федерации. Информационно-аналитические материалы. М., 2000. Вып. 2. С. 66-69.
Gubar Y.P. Brown Bear // Status of resources of game animals in the Russian Federation. In-formation-analytical materials. Moscow, 2000. Vol. 2, pp 66-69.
Губарь Ю.П. Бурый медведь // Состояние ресурсов охотничьих животных в Российской Федерации 2000-2003 гг. Информационноаналитические материалы. М., 2004. Вып. 6. С. 75-79.
Gubar Y.P. Brown Bear // Status of resources of game animals in the Russian Federation of 2000-2003. Information-analytical materials. M., 2004. Vol. 6. P. 75-79.
Губарь Ю.П. Бурый медведь // Состояние ресурсов охотничьих животных в Российской Федерации 2003-2007 гг. Информационноаналитические материалы. М., 2007. Вып.
8. С. 73-81.
Gubar Y.P. Brown Bear // Status of resources of game animals in the Russian Federation of 2003-2007. Information-analytical materials. Moscow, 2007. Vol. 8. S. 73-81.
Губарь Ю.П. Бурый медведь // Состояние охотничьих ресурсов в Российской Федерации 2008-2010 гг. Информационноаналитические материалы. М., 2010. Вып.
9. С. 153-161.
Gubar Y.P. Brown Bear // Status of hunting resources in the Russian Federation of 2008-2010. Information-analytical materials. M., 2010. Vol. 9. S. 153-161.
Данилов П.И., Русаков О.С., Туманов И.Л. Хищные звери Северо-Запада СССР. Л.: Наука, 1979.164 с.
Danilov P.I., Rusakov O.S., Tumanov I.L. Carnivorous animals Northwest of the USSR. L .:
Science, 1979. 164 pp.
Данилов П.И., Белкин В.В., Николаевский А.А. Методические рекомендации по организации и проведению учета бурого медведя. Петрозаводск: РИО Карельского филиала АН СССР, 1985. 13 с.
Danilov P.I., Belkin V.V., Nicholas A. Guidelines for organizing and conducting the account of the brown bear. Petrozavodsk: RIO Karelian Branch of the USSR, 1985. 13 p.
Данилов П.И., Тирронен К.Ф., Белкин В.В., Панченко Д.В., Фёдоров Ф.В. Бурый медведь и оценка его численности в Европейской тайге. Петрозаводск: ИД «ПетроПресс», 2014. 59 с.
Danilov P.I., Tirronen K.F., Belkin V.V., Panchenko D.V., Fedorov F.V. Brown bear and the assessment of its population in the European taiga. Petrozavodsk: ID "PetroPress", 2014. 59 p.
Зубченко A.B., Веселов A.E., Калюжин C.M. Горбуша (Qncorhynchus gorbuscha) проблемы акклиматизации на Европейском Севере России. Петрозаводск-Мурманск,2004.82 с.
Zubchenko A.V. Veselov А.Е., Kalyuzhin S.M. Pink salmon (Oncorhynchus gorbuscha) acclimatization problems in the European North of Russia. Petrozavodsk, Murmansk, 2004. 82 p.
Методические указания по определению численности бурого медведя // под ред. Ю.П. Губаря. М., 1990. 31 с.
Guidelines for determination of the number of brown bears // ed. Y.P. Gubar. Moscow, 1990. 31 pp.
Наумов Н.П. Экология животных. М.: Высшая школа, 1963. 618 с.
Naumov N.P. Animal Ecology. М .: Higher School, 1963.618 pp.
Пажетнов В.С. Человек - бурый медведь. Формирование взаимоотношений // Мат. Всерос. конф. «Медведи. Современное состояние видов. Перспектива сосуществования с человеком», Торопецкая биостанция «Чистый лес», Тверская обл., Россия. (17-21 сентября 2011 г.). 2011. С. 213-221.
Pazhetnov V.S. Man - the brown bear. Forming relationships // Mat. Proc. Conf. "The Bears. The current state of the species. The prospect of coexistence with man, "Toropetskaya Biological Station" Clean Forest ", Tver reg., Russia. (17-21 September 2011). 2011. pp 213-221.
Пажетнов В.С., Кораблев П.Н. Абсолютный учет численности бурого медведя в Центральнолесном заповеднике // Экол. основы охраны и рационального использования хищных млекопитающих. М.: Наука, 1979. С. 227-228.
Pazhetnov V.S., Korablev P.N. Absolute counts of brown bear in Tsentralnolesnom // Ecological Reserve, framework for the protection and rational use of predatory mammals. M .: Science, 1979, pp. 227-228.
Ревенко И.А. Бурый медведь. Камчатка // Медведи: бурый медведь, белый медведь, гималайский медведь. М.: Наука, 1993. С. 380-403.
Revenko LA. Brown bear // Kamchatka bears: brown bear, polar bear, Asiatic black bear. M .: Nauka, 1993. p. 380-403.
Семенов-Тян-Шанский О.И. Звери Мурманской области. Мурманск, 1982. 175 с.
Semenov-Tyan-Shan O.I. Beasts of the Murmansk region. Murmansk, 1982. 175 pp.
Сироткин И.В., Пачковский Дж. Питание бурого медведя тихоокеанскими лососями на реке Кроноцкая, Камчатка // Бурый медведь Камчатки: экология, охрана и рациональное использование. Владивосток: Даль-наука, 2006. С. 78-84.
Sirotkin I.V., Pachkovsky J. Meals brown bear of Pacific salmon in the river Kronotsky, Kamchatka // Kamchatka brown bear ecology, protection and rational use. Vladivostok: Dal'nauka, 2006, pp. 78-84.
Хохлов A.H., Макарова O.A Состояние популяции бурого медведя Мурманской области в начале XXI века // Матер. VII Всеросс. конф. «Медведи России и прилегающих стран: состояние популяций, система человек - медведи, эксплуатация, охрана, воспроизводство». ЦЛГПБЗ. 2006. С. 149-152.
Khokhlov A.N., Makarova O.A. Status brown bear population of the Murmansk region in the beginning of XXI century // Mater. VII AllRussia. Conf. "Medvedev of Russia and adjacent countries: population status, the system man - bears, exploitation, protection, reproduction." TSLGPBZ. 2006, pp 149-152.
Хохлов A.H., Макарова O.A. К оценке популяции бурого медведя Мурманской области // Матер. VIII Всеросс. конф. «Медведи. Современное состояние видов. Перспектива сосуществования с человеком». Великие Луки, 2011. С. 301-303.
Khokhlov A.N., Makarova O.A. By the estimation of the brown bear population of the Murmansk region // Mater. VIII All-Russia. Conf. "The Bears. The current state of the species. The prospect of coexistence with man. " Great Luke, 2011.pp 301-303.
Чернявский Ф.Б., Кречмар M.A. Бурый медведь (Ursus arctos L.) на Северо-Востоке Сибири. Магадан, 2001. 73 с.
Chemiavsky F.B., Krechmar M.A. Brown bear (Ursus arctos L.) in the North-East Siberia. Magadan, 2001.73 p.
Ben-David M., Titus K., Beier LaVem R. Consumption of salmon by Alaskan brown bears: a trade-off between nutritional requirements and the risk of infanticide? // Oecologia. V. 138. 2004. P. 465-474.
Herrero, S. Bear Attacks, Their Causes and Avoidance. Piscataway, NJ: Winchester Press. 1985.287 р.
Klein D.K. Track differentiation for censusing bear populations // J. Wildlife Manag. Vol. 23, No 3. 1959. P. 361-363.
Kojola L, Heikkinen S. Problem brown bears Ursus arctos in Finland in relation to bear feeding for tourism purposes and the density of bears and humans // Wild!. Biol. V. 18. 2012. P. 258-263.
Kopatz A., Eiken H.G., Aspi J., Kojola L, Tobiassen C., Tirronen K.F., Danilov P.I., Hagen S.B. Admixture and Gene Flow from Russia in the Recovering Northern European Brown Bear (Ursus arctos) // PLOS one. Vol. 9, Issue 5. 2014. P. 1-10.
Linacre A, Gusmao L, Hecht W, et al. ISFG: Recommendations regarding the use of nonhuman (animal) DNA in forensic genetic investigations // Forensic Science International-Genetics V.5. 2011. P. 501-505.
Pulliainen E. Recolonization of Finland by the brown bear in the 1970s and 1980s. Aquilo Zool 27. 1990. P. 21-25.
Pulliainen E. The expansion of brown bears from east into Finland. International Bear News 6. 1997. P. 10-11.
Taberlet P., Camarra J.J., Griffin S., Uhres E., Ha-notte O., Waits L.P., Dubois-Paganon C., Burke T., Bouvet J. Noninvasive genetic tracking of the endangered Pyrenean brown bear population. Molecular Ecology. 6. 1997. P. 869-876.
